感染和免疫中的铁
From: James E. Cassat,医学博士,博士 和 Eric P. Skaar,博士,公共卫生硕士
铁是人类和病原微生物的必需营养素。由于能够以两种氧化态之一存在,铁是多种细胞过程(包括呼吸和 DNA 复制)的理想氧化还原催化剂。然而,铁的氧化还原电位也会导致其毒性,因此必须小心控制铁的浓度和分布。鉴于几乎所有人类病原体对铁的绝对需求,先天免疫系统的一个重要方面是在称为营养免疫的过程中限制入侵微生物的铁可用性。因此,成功的人类病原体必须具有规避营养免疫的机制才能引起疾病。
一.铁稳态在人类健康和疾病中的作用机制
铁是人类必需的营养素,在许多细胞过程中具有关键功能。铁的生物学效用在于它能够在两种氧化态之间循环:亚铁 (Fe 2+ ) 或三价铁 (Fe 3+ )。因此,铁可以用作氧化还原催化剂,接受或提供电子。然而,铁的氧化还原电位在铁过载条件下也会产生细胞毒性。活性氧中间体是在正常细胞稳态过程中产生的。在存在此类活性氧的情况下,铁可以催化芬顿反应生成羟基自由基,从而破坏脂质、DNA 和蛋白质。因此,调节铁的数量和亚细胞定位至关重要。
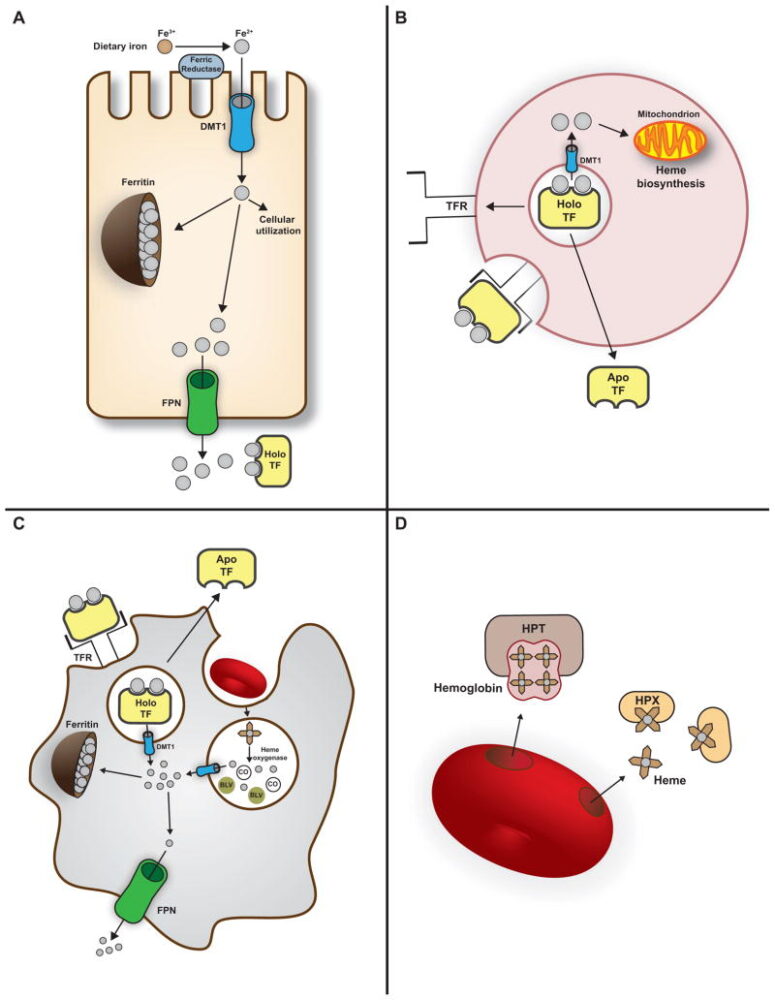
铁吸收发生在近端十二指肠,吸收的铁量取决于铁储备的充足性。人体铁代谢非常有效,因为成人每天约 4-5 克全身铁中只有 0.5-1 毫克丢失(Nathan 等人,2003 年)。到达十二指肠后,三价铁被存在于肠细胞顶端刷状缘的三价铁还原酶还原(图 1A). 然后二价金属离子转运蛋白 DMT1(也称为 Nramp2)将亚铁转运到肠细胞中。转运到肠细胞后,亚铁可以储存起来,用于细胞过程,或通过基底外侧膜转运蛋白铁转运蛋白 (FPN1) 离开细胞(Abboud 和 Haile,2000 年;Donovan 等人,2000 年;McKie 等人,2000年) ). 在健康个体中,几乎所有释放到血浆中的铁都与转铁蛋白结合,从而限制铁催化的自由基产生并促进向靶细胞的运输。将载铁转铁蛋白递送至靶细胞是通过受体介导的内吞作用完成的(图 1B). 核内体酸化促进铁的释放,脱辅基转铁蛋白 – 转铁蛋白受体复合物被循环到细胞表面。从转铁蛋白释放的三价铁在核内体中被铁还原酶 STEAP3 还原,随后被 DMT1 转运到细胞质中(Nathan 等人,2003 年)。从这一点来看,铁的命运取决于细胞的需求。铁可用于血红素的生物合成,血红素是一种四吡咯分子,既可作为金属酶的辅基,又可作为血红蛋白的氧结合部分。或者,铁可以并入铁硫簇,即金属酶中使用的氧化还原辅助因子。最后,铁可以作为铁蛋白储存在细胞内,铁蛋白是一种球形杂聚物,能够储存超过 4000 个铁原子。
人体铁稳态
A)在转运到十二指肠肠细胞之前,饮食中的三价铁被存在于顶端刷状缘中的三价铁还原酶还原。二价铁通过 DMT1 转运到细胞中,之后可用于细胞过程,储存在铁蛋白中,或通过铁转运蛋白 (FPN) 离开细胞。细胞外铁通过转铁蛋白 (TF) 以高亲和力结合。B)红细胞前体通过转铁蛋白受体 (TFR) 获取铁——介导的 holo-TF 内吞作用,然后铁通过 DMT1 转运到细胞质中。细胞质铁随后可以穿梭到线粒体以用于血红素生物合成。C)巨噬细胞通过 TFR 介导的 holo-TF 内吞作用或衰老红细胞的再循环获取铁。血红素加氧酶催化血红素降解为铁、CO 和胆绿素,之后铁通过 DMT1 转运至细胞质。细胞质铁可用于细胞过程,储存在铁蛋白中,或通过 FPN 运出巨噬细胞。D)红细胞裂解时释放的血红蛋白或血红素分别被触珠蛋白 (HPT) 或血红素结合蛋白 (HPX) 强烈清除。
人体铁的大部分存在于红细胞中,与血红蛋白中的血红素部分复合。四个血红素分子与每个血红蛋白四聚体结合。每个红细胞可包含多达 2.8 亿个血红蛋白分子,导致每个细胞的铁容量超过 10 亿个原子(Nathan 等人,2003 年)。血红蛋白的主要功能包括向组织输送氧气、从体内清除二氧化碳和一氧化碳,以及通过一氧化氮结合调节血管张力。衰老红细胞中的血红蛋白被网状内皮系统中的巨噬细胞精心回收(图 1C). 血红素加氧酶 (HO-1) 从原卟啉环释放铁和一氧化碳,导致胆绿素的产生并将铁穿梭回转铁蛋白或铁蛋白池。
铁代谢受到严格调节,以避免与铁过载相关的细胞损伤和与缺铁相关的贫血。铁水平由铁调节蛋白(IRP1 和 IRP2)控制,这些蛋白与铁代谢相关的 mRNA 编码因子中的铁反应元件 (IRE) 结合。除了 IRP 介导的细胞铁水平调节外,铁代谢也受到系统调节。铁调素是一种在肝脏中产生的肽类激素,可在翻译后调节铁转运蛋白,从而控制铁在肠细胞吸收后进入血浆。体内总铁储备的增加触发铁调素的产生,随后诱导铁转运蛋白的内化和降解(Nemeth 等人,2004 年)). 由于铁转运蛋白存在于巨噬细胞表面,铁调素在被网状内皮系统循环后也会减少铁输出。
二. 铁限制作为先天免疫防御
除了减轻与低铁血症或高铁血症相关的毒性外,铁分布的调节还可以作为抵抗入侵病原体的先天免疫机制。即使在没有感染的情况下,人体铁代谢的几个方面也确保病原微生物几乎无法接触到铁。首先,人体中的大部分铁被隔离在细胞内,与红细胞内的血红蛋白复合。因此,一些病原体已经进化出通过裂解红细胞最终从血红素中提取铁来释放血红蛋白的机制。然而,溶血性病原体随后必须与触珠蛋白和血红素结合蛋白竞争,后者是宿主糖蛋白,分别清除释放的血红蛋白和血红素。图 1D). 限制铁对入侵病原体可用性的第二个因素是游离细胞外铁的缺乏。细胞外铁与转铁蛋白以高亲和力结合,在健康个体中,转铁蛋白的铁饱和度通常低于 50%。当超过转铁蛋白结合能力时,铁也可以被血浆中的许多分子螯合,亲和力较低,包括白蛋白、柠檬酸盐和氨基酸 ( Nathan et al., 2003 )。
在感染期间,会出现额外的铁扣留防御强化(图)。2 Cartwright 等人在开创性研究中记录了感染引起的低铁血症。在 1940 年代,他注意到在给犬科动物肌肉注射金黄色葡萄球菌后血浆铁水平急剧下降。静脉内注射无菌松节油后出现类似的低铁反应,这表明炎症而非特定的微生物产物是导致血浆铁水平下降的原因(Cartwright 等人,1946 年)。自从这些初步观察以来,关于铁扣留对宿主-病原体相互作用结果的重要性已经了解了很多。
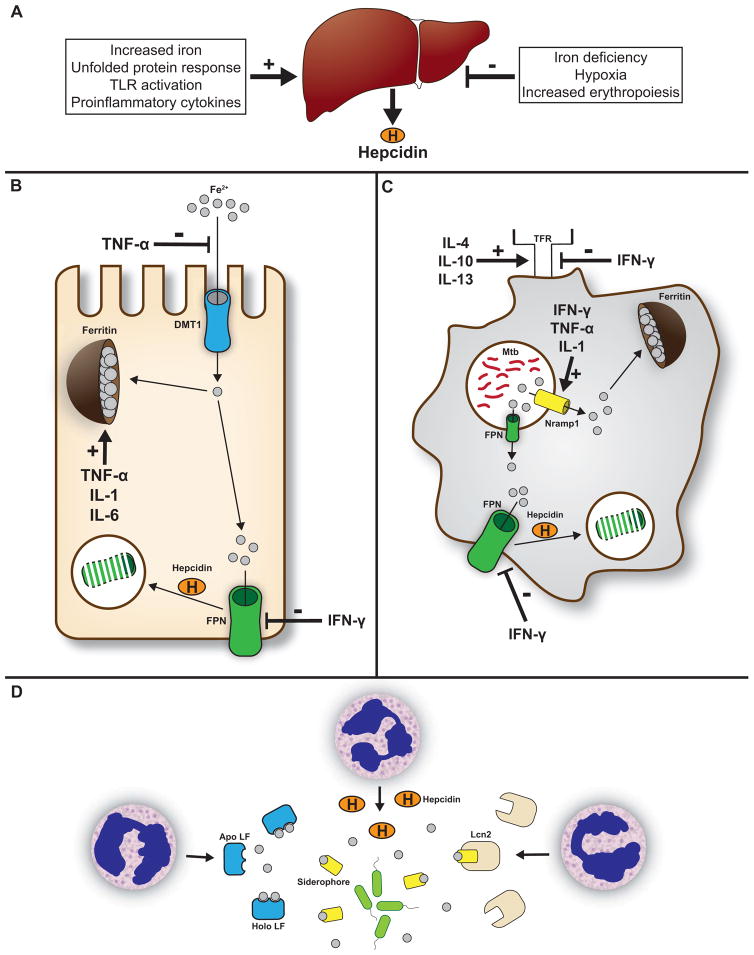
铁调素是对感染的低铁血症反应的主要协调者。事实上,铁调素最初被表征为人尿液和血液超滤液中的抗菌肽(Krause 等人,2000 年;Park 等人,2001 年)。促炎细胞因子、TLR 激活和内质网未折叠蛋白反应的诱导会刺激肝脏释放 Hepcidin(图 2A)(德雷克史密斯和普伦蒂斯,2012 年)。除了在肝脏中产生 hepcidin 之外,中性粒细胞和巨噬细胞合成 hepcidin 以响应感染因子,从而调节感染病灶处的铁可用性(Peyssonnaux 等人,2006 年)。
铁限制作为先天免疫防御
A)感染和炎症期间铁调素合成的调节。B)促炎细胞因子通过抑制 DMT1 介导的铁吸收和激活铁蛋白合成来加强铁抑制防御。Hepcidin 诱导 FPN 的内化和降解,进一步限制铁的排出。C)响应炎症信号,巨噬细胞下调 TFR,限制铁的摄取。铁通过 Nramp1 从吞噬体中主动去除,Nramp1 是一种由 IFN-γ、TNF-α 和 IL-1 刺激的活性。这些作用最终导致细胞内病原体如 Mtb(以红色表示)的铁可用性降低。D)先天免疫效应器通过局部产生乳铁蛋白 (LF)、铁调素和铁蛋白运载蛋白/脂运载蛋白-2 (Lcn2) 进一步限制感染病灶处的铁可用性。病原体(以绿色表示)通过产生铁载体来规避铁螯合。
对感染的低铁血症反应也是由铁调素独立机制介导的。干扰素-γ、肿瘤坏死因子-α、IL-1 和 IL-6 等细胞因子调节铁代谢以进一步加强铁抑制防御(图 2B – C)(Nairz 等人,2010 年;Weiss,2005 年)。
除了通过 hepcidin 依赖和独立机制系统性诱导低铁血症外,先天免疫效应器还在感染灶局部进一步隔离铁。图 2C–D). 乳铁蛋白是一种宿主糖蛋白,与转铁蛋白一样,以高亲和力结合游离铁。粘膜分泌物含有高浓度的乳铁蛋白,构成粘膜表面铁限制的组成机制。此外,中性粒细胞的特定(“二级”)颗粒含有乳铁蛋白,它会在感染部位释放以响应细胞因子(Masson 等人,1969)。此外,与转铁蛋白不同,乳铁蛋白在低 pH 值下保持铁结合能力,因此可能是酸中毒感染灶中更有效的清除剂(Baker 和 Baker,2012 年)。感染部位吞噬细胞的激活也限制了细胞内病原体对铁的利用。图 2C). 模式识别受体结合和促炎细胞因子降低吞噬细胞表面转铁蛋白受体的表达,同时增强细胞内铁转运蛋白 Nramp1 的表达。Nramp1(天然抗性相关巨噬细胞蛋白-1)是一种二价金属离子转运蛋白,已被提议用于降低早期内体中的铁含量,从而限制该区室中细胞内病原体的可用性(Jabado 等人,2000 年;Vidal等人, 1995 年)。然而,Nramp1 也被认为可以促进铁进入晚期核内体和溶酶体,利用铁的毒性来控制微生物生长(Zwilling 等人,1999 年)). 已发现 Nramp1 的多态性与人类对结核分枝杆菌(Mtb)的易感性增强相关,表明吞噬体内铁限制可能是一种重要的先天免疫防御(van Crevel 等人,2009 年)。
增加对传染病易感性的铁稳态紊乱
铁过载综合征的病理后果强调了严格调节铁代谢的重要性。患有铁过载的个体不仅会因游离铁的不利氧化还原化学而遭受细胞损伤,而且感染的风险也会增加。铁超载可能由铁代谢基因突变引起,例如遗传性血色素沉着症。或者,铁过载可能继发于顽固性贫血或由慢性输血引起。
遗传性血色素沉着症是一种异质性疾病,由至少五种不同类型的铁代谢相关基因突变引起。患有血色素沉着症的患者会在心脏和肝脏等器官中形成铁沉积物,导致氧化损伤、肝功能障碍和心肌病。血色素沉着症优先采用连续放血治疗,或者当无法进行放血时,使用铁螯合剂。铁过载也可能继发于难治性贫血、慢性输血或慢性肝病。“铁负荷”难治性贫血,如 β 地中海贫血和铁粒幼细胞性贫血,其特征是红细胞增生、无效红细胞生成和铁吸收过多。这些患者会经历在血色素沉着症患者中观察到的许多与铁相关的器官病变。
无论潜在的病因如何,在铁过载期间铁对入侵病原体的可用性都会增加,因此这些人对各种传染病的易感性增加。因血色素沉着病和地中海贫血而导致铁过载的患者更容易感染耶尔森菌属、单核细胞增生李斯特菌和创伤弧菌等(Long 等人,2003 年)。
病原微生物获取铁
主要由细胞外细菌病原体获取铁
铁是几乎所有感染人类的细菌的必需营养素。因此,细菌病原体必须具有克服铁扣留防御的机制,才能成功地在人类中定殖。用于实现这一目标的具体策略在很大程度上取决于宿主生态位,以及微生物是否主要采用细胞内或细胞外生活方式。细菌病原体在首选铁源方面也不同,无论是游离的、与宿主化合物螯合的,还是与血红素和血红蛋白相关的。然而,细菌病原体采用一种或五种主要机制的组合来满足对营养铁的需求(图 3). 伯氏疏螺旋体使用的一种机制是在金属酶中利用锰代替铁,从而消除了对铁采集系统的需求(Posey 和 Gherardini,2000 年)。获取宿主铁的其他机制包括铁载体、血红素获取系统、转铁蛋白或乳铁蛋白受体以及三价铁或二价铁转运蛋白的产生。在以下部分中,模型细菌病原体被用作示例来进一步描述宿主铁获取的策略.
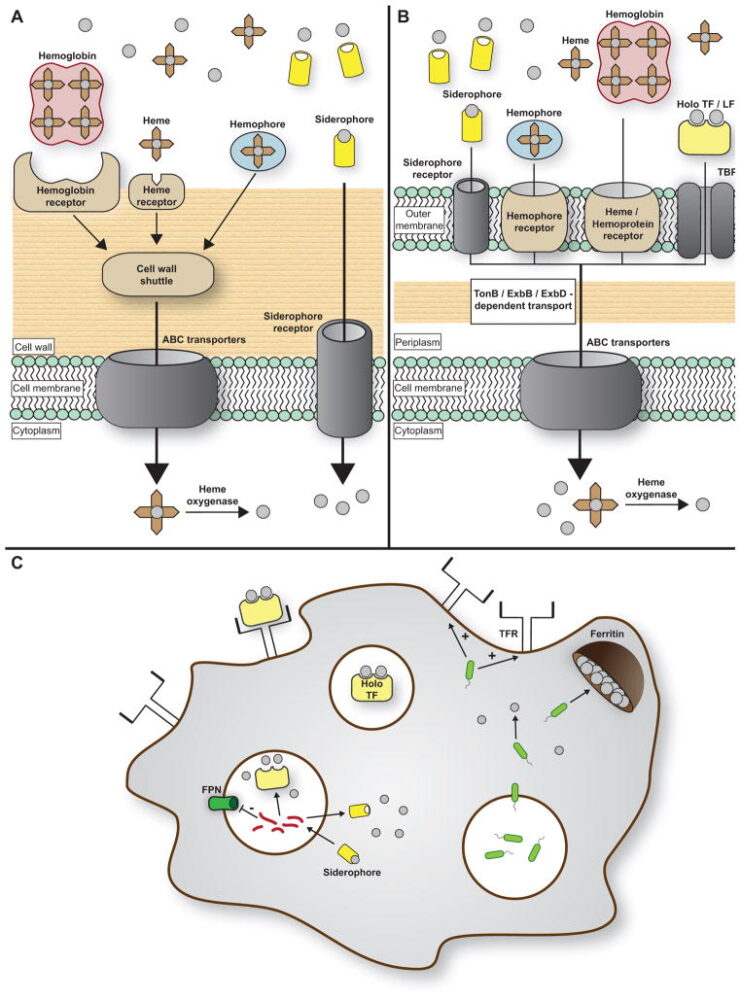
铁获取的细菌策略
细菌病原体使用多种策略来克服宿主铁限制。未显示的是三价铁/二价铁转运蛋白和金属酶中锰替代的疏螺旋体策略。A)革兰氏阳性生物体可以通过使用血红素和血红蛋白细胞表面受体,或通过分泌血细胞 ( B. anthracis ) 来获取铁。然后血红素穿梭穿过细胞壁,然后通过 ABC 型转运蛋白转运到细胞质中。一旦进入细胞质,血红素可被血红素加氧酶降解以释放铁。或者,革兰氏阳性病原体可能会分泌铁载体,铁载体捕获铁,然后通过使用特定的转运蛋白重新进入细胞。二)革兰氏阴性生物体也利用铁载体和血红素/血红素蛋白受体来获取宿主铁。选择革兰氏阴性病原体表达转铁蛋白 (TF) 或乳铁蛋白 (LF) 结合蛋白 (TBP/LBP),允许使用转铁蛋白或乳铁蛋白结合铁。革兰氏阴性细菌需要 TonB/ExbB/ExbD 系统产生的能量,以便在通过 ABC 型转运蛋白输送到细胞质之前能够跨外膜和周质运输。C)细胞内病原体也会产生铁载体,在 Mtb 的情况下(以红色表示)可以扩散出吞噬体以捕获细胞质铁。此外,Mtb 和其他细胞内病原体可以在 TF 循环通过内吞途径时从中获取铁。其他细胞内病原体(以绿色表示)从吞噬体中逃逸,允许使用游离细胞质铁和铁蛋白铁作为营养源。细胞内病原体也可以操纵宿主细胞铁稳态以增加铁的可用性。例如,Mtb 抑制 FPN 的表达,有效增加吞噬体内的铁含量。此外,一些细胞内病原体会增强转铁蛋白受体 (TFR) 的表达。
铁载体
由范围广泛的革兰氏阳性和革兰氏阴性人类病原体产生,铁载体是能够结合结合常数超过 10 50 的铁的小三价铁螯合剂( Bullen JJ, 1999 )。因此,铁载体可以有效地胜过宿主转铁蛋白,后者以大约 10 36的缔合常数结合铁。由于其令人难以置信的铁结合亲和力,铁载体在临床上用于治疗铁过载综合征(例如,来自Streptomyces pilosus的去铁胺 B )。它们在铁可用性低的条件下合成并分泌到细胞外环境中,在那里它们结合三价铁并促进其被微生物细胞使用(图 3A–3B). 一旦进入细胞,与铁载体结合的铁可以通过铁载体的酶促降解或通过将三价铁还原为亚铁而释放,这会破坏铁-铁载体复合物的稳定性。基于铁载体的铁获取策略的一个优点是可以吸收异铁载体,或微生物不产生的铁螯合分子。例如,创伤弧菌、金黄色葡萄球菌和小肠结肠炎耶尔森氏菌等可以利用去铁胺 B 作为铁源。因此,去铁胺螯合疗法可能会增加铁过载患者的感染风险(Kim 等人,2007 年)。
细菌铁载体的产生通常由铁摄取调节剂 (Fur) 或白喉毒素调节剂 (DtxR) 以铁依赖性方式进行调节。在铁存在的情况下,Fur 和 DtxR 都会抑制靶基因的转录。在缺铁环境中,转录抑制得到缓解,铁稳态系统的合成可以继续进行。铁载体的产生有助于多种病原体的毒力,包括金黄色葡萄球菌、大肠杆菌、嗜肺军团菌和炭疽杆菌等(Cassat 和 Skaar,2012 年)). 了解铁载体破坏宿主生物过程的机制是一个活跃的研究领域。Pyoverdin 是铜绿假单胞菌产生的两种铁载体之一,通过诱导依赖于铁反应性转录因子 HIF-1 的缺氧反应引起秀丽隐杆线虫宿主细胞死亡( Kirienko等人,2013 年)。鉴于铁载体劫持宿主铁稳态的能力,人类先天免疫系统已经进化出抵消铁载体介导的铁获取的机制也就不足为奇了。铁运载蛋白,也称为脂质运载蛋白 2 (Lcn2) 或中性粒细胞明胶酶相关脂质运载蛋白,在对感染的急性期反应期间表达并隔离铁载体。图 2D). Siderocalin 最初的特点是能够结合大肠杆菌铁载体肠螯素,从而抑制其生长。因此,缺铁蛋白的小鼠表现出对大肠杆菌败血症的易感性增强(Flo 等人,2004 年)。由于铁蛋白有效地中和铁载体介导的铁摄取,病原体已经进化出机制来规避这种宿主防御。一种这样的机制是“隐形铁载体”的产生,它具有阻止铁蛋白结合的结构修饰。例如,这种策略被炭疽杆菌和鼠伤寒沙门氏菌使用,它们都产生不受铁蛋白结合的修饰铁载体(Abergel 等人,2006 年); Raffatellu 等人,2009 年)。这样,铁依赖性病原体就可以在宿主铁的争夺中保持竞争优势。
革兰氏阳性细菌通常编码直接血红素摄取系统,尽管血红素依赖性摄取系统已在炭疽芽孢杆菌中得到表征(图 3A)(Maresso 等人,2008 年)。金黄色葡萄球菌铁调节表面决定簇 (Isd) 系统是革兰氏阳性细菌直接摄取血红素的范例。尽管它编码其他铁获取途径,但金黄色葡萄球菌的首选铁源是血红素(Skaar 等人,2004b)。Isd 系统由五个操纵子中的十个基因编码:isdA、isdB、isdCDEFsrtBisdG、isdH和isdI(Hammer 和 Skaar,2011 年;Mazmanian 等人,2003 年;Mazmanian 等人,2002 年)。IsdB 和 IsdH 编码分别结合血红蛋白和血红蛋白-触珠蛋白的细胞表面受体(Dryla 等人,2003 年;托雷斯等人,2006 年)。然后血红素通过 IsdA 和 IsdC 穿梭穿过细胞壁,然后通过 ABC 型转运蛋白 IsdDEF 转运到细胞质中(Grigg 等人,2007 年)。进入细胞质后,血红素可以完整地穿梭到细胞膜,或被血红素加氧酶 IsdG 和 IsdI 降解以释放铁(Reniere 和 Skaar,2008 年;Skaar 等人,2004a)。与将血红素降解为铁、胆绿素和一氧化碳的哺乳动物血红素加氧酶不同,葡萄球菌血红素加氧酶将血红素降解为铁和新型发色团葡萄球菌素(Reniere 等人,2010 年)。Isd 系统获取血红素对于金黄色葡萄球菌的发病机制至关重要(Cassat 和 Skaar,2012 年). 值得注意的是,金黄色葡萄球菌Isd 系统已经进化为优先利用人类血红蛋白,而不是来自其他物种的血红蛋白。因此,表达人类血红蛋白等位基因的转基因小鼠更容易感染金黄色葡萄球菌(Pishchany 等人,2010 年)。Isd 系统的同系物存在于其他葡萄球菌物种和多种革兰氏阳性病原体中(Cabanes 等人,2002 年;Haley 等人,2011 年;Skaar 等人,2006 年;Zapotoczna 等人,2012 年)。
革兰氏阴性菌可以通过直接摄取系统、血细胞介导系统或两者获得血红素(图 3B). 铜绿假单胞菌表达直接摄取系统和血红素获取的血细胞介导系统。铜绿假单胞菌直接摄取血红素系统由 Fur 调节的操纵子编码,其中phuR编码外膜血红素受体,phuT编码周质血红素转运蛋白,phuUVW编码细胞膜相关 ABC 转运蛋白,phuS编码细胞质血红素-结合蛋白 ( Tong and Guo, 2009). 跨革兰氏阴性外膜的血红素转运依赖于能量,需要 TonB/ExbB/ExbD 系统。TonB 跨越周质,利用来自质子动力的能量使底物从外膜受体传递。TonB/ExbB/ExbD 系统也参与铁载体-铁复合物的运输。一旦血红素被输送到革兰氏阴性生物的细胞质中,它就可以被血红素加氧酶降解以释放铁。许多革兰氏阴性病原体表达了类似的直接血红素摄取系统(Anzaldi 和 Skaar,2010)。
铜绿假单胞菌还表达血细胞介导的血红素摄取系统。HasAp 是粘质沙雷氏菌19 kDa 细胞外血红素结合蛋白 HasA的同系物( Letoffe 等人,1998)。HasA 由 I 型分泌途径分泌,从宿主血红素蛋白中捕获细胞外血红素,然后与 TonB 依赖性血红素受体 HasR 相互作用(Cescau 等,2007)。Has 系统的同系物存在于P. fluorescens、Y. pestis和Y. enterocolitica中(Tong 和 Guo,2009)。
转铁蛋白/乳铁蛋白受体
铁载体允许细菌病原体与高亲和力铁结合宿主糖蛋白转铁蛋白和乳铁蛋白竞争。然而,一些病原体已经进化出直接获取转铁蛋白或乳铁蛋白结合铁的机制。图 3B). 脑膜炎奈瑟球菌表达转铁蛋白和乳铁蛋白摄取系统。与其作为专性人类病原体的作用一致,脑膜炎奈瑟球菌优先利用人转铁蛋白(Schryvers 和 Morris,1988). 转铁蛋白受体由两种蛋白质组成,TbpA 和 TbpB,两者均在铁限制条件下表达并受 Fur 调节。同样,乳铁蛋白结合受体由 LbpA(以前称为 IroA)和 LbpB 组成,并且也受 Fur 调节。使用转铁蛋白和乳铁蛋白作为铁源需要 TonB/ExbB/ExbD 系统。TbpA-转铁蛋白复合物的晶体结构表明 TonB 促进 TbpA 构象变化的机制,允许从转铁蛋白释放三价铁并随后转运到周质中(Noinaj 等人,2012 年)。转铁蛋白结合对于奈瑟菌属的毒力很重要,因为tbp突变体在人类感染模型中是无毒的(Cornelissen 等人,1998 年)。
血红素吸收系统
由于人体中的大部分铁都包含在血红蛋白中,因此许多病原体已经形成了从红细胞中释放血红蛋白并利用血红素作为营养物质的机制。然而,如果血红素的水平没有得到适当的调节,它的氧化还原能力也有可能引发细胞毒性。因此,细菌病原体必须仔细平衡血红素获取与血红素解毒。可通过内源性血红素生成、外源性血红素获取或这些活动的某种组合来满足对血红素的需求。一些细菌病原体,例如流感嗜血杆菌, 不能进行内源性血红素生物合成,因此完全依赖于外源性血红素的获取。存在两大类细菌血红素获取系统:直接血红素摄取系统和血细胞依赖系统(Anzaldi 和 Skaar,2010)。所有血红素获取系统都包含结合血红素或血红素蛋白的细胞表面受体、将血红素穿梭穿过细胞壁和细胞膜的机制,以及从血红素中释放铁或将血红素完整地穿梭到含血红素酶的细胞质成分。
IIb. 细胞内细菌病原体获取铁
在感染期间主要采用细胞内生活方式的细菌病原体可能会遇到铁含量不同的细胞区室。巨噬细胞是细胞内复制的常见生态位,通过回收宿主含铁化合物在铁稳态中发挥关键作用。因此,细胞内病原体采用不同的策略来获取指定用于储存、宿主细胞过程或回收的铁。图 3C)(Nairz 等人,2010 年)。
Mtb 是一种兼性细胞内病原体,感染了世界上大约三分之一的人口。它通过雾化飞沫传播,最初定植于末端空域,在那里它被肺泡巨噬细胞吞噬。在巨噬细胞内,Mtb 会破坏吞噬溶酶体的成熟,这是一种对病原体存活至关重要的铁依赖性过程(Olakanmi 等人,2000 年)。因此,细胞内分枝杆菌利用多种机制来获取宿主铁。类似于主要是细胞外的病原体,致病性分枝杆菌表达称为分枝杆菌素的铁载体,其生物合成已使用脂质组学分析进行了优雅的研究(Madigan 等人,2012 年)). 分枝杆菌素合成的中断会损害巨噬细胞内的生长,这表明铁载体的产生是 Mtb 的重要铁获取策略(De Voss 等人,2000 年)。放射性标记研究表明,Mtb 在通过内吞途径循环时从转铁蛋白或从细胞质铁储存中获取铁(Olakanmi 等人,2002 年)。分枝杆菌素扩散出吞噬体、螯合铁并通过脂滴与吞噬体重新结合的能力促进了细胞质铁的获取(Luo 等人,2005 年)). 这种策略实质上增加了 Mtb 可以访问的宿主铁的细胞内池。有趣的是,遗传性血色素沉着症患者的细胞内铁水平降低,因此来自此类个体的单核细胞不太容易复制 Mtb(Olakanmi 等人,2002 年)。因此,虽然遗传性血色素沉着症通常会增强对传染病的易感性,但某些亚型可能具有针对细胞内病原体的选择性优势。Mtb 还采用血红素/血红蛋白摄取系统来获取宿主铁,尽管血红素摄取的确切机制尚未阐明(Tullius 等人,2011 年)。
为了抵消 Mtb 铁的获取,IFN-γ 激活巨噬细胞以下调细胞表面转铁蛋白受体,从而有效降低晚期内体中的铁浓度(Olakanmi 等人,2002 年)。此外,铁转运蛋白迅速定位于 Mtb 感染的吞噬溶酶体,导致铁从该细胞区室流出。分枝杆菌通过直接调节铁转运蛋白表达来规避这些铁抑制防御(Van Zandt 等人,2008 年)。
IIc. 细菌病原体中的铁解毒策略
铁的强大氧化还原能力要求细菌病原体仔细调节铁的浓度和分布。病原微生物使用类似于人体铁稳态的机制来维持铁的适当分布:储存、摄取调节和外排调节。如上所述,铁的获取是根据铁依赖性调节剂(如 Fur 和 DtxR)的环境线索进行调节的。然而,获取也必须与储存和流出仔细协调,以确保铁稳态。
过量的铁可以储存在铁储存蛋白中,产生细胞内过剩的铁,可以在缺铁条件下使用,同时也限制了铁介导的自由基形成的可能性。细菌病原体将铁储存在三种蛋白质之一中:铁蛋白、细菌铁蛋白和 Dps 蛋白。铁蛋白和细菌铁蛋白具有相似的结构,每个分子由 24 个亚基组成,围绕铁储存腔组装成一个球体。细菌铁蛋白每 24 聚体还含有多达 12 个血红素分子。相比之下,Dps 蛋白是球形 12mers,每个分子容纳较少的铁原子 ( Andrews et al., 2003 )。铁蛋白和细菌铁蛋白促进缺铁病原体如大肠杆菌的生长,空肠弯曲菌和幽门螺杆菌可防止氧化还原应激,并有助于在宿主内生存。例如,Mtb 铁蛋白生物合成的破坏限制了对氧化应激的抵抗力,增强了对抗生素的敏感性,并降低了慢性感染模型中的细菌存活率(Pandey 和 Rodriguez,2012 年)。类似地,Dps 和铁蛋白 FtnB 都是鼠伤寒沙门氏菌完全毒力所必需的( Halsey等人,2004 年;Velayudhan 等人,2007 年)。
减轻铁毒性的另一种策略是输出含铁化合物或其有毒代谢物。该策略的模型系统由金黄色葡萄球菌血红素调节转运体 (Hrt)提供。金黄色葡萄球菌中存在血红素解毒系统,这一观察表明,暴露于亚抑制浓度血红素的葡萄球菌随后可以抵抗超生理浓度的血红素毒性(Torres 等人,2007 年)。HrtAB 被确定为 ABC 型转运蛋白,在血红素暴露后显着增加丰度(Friedman 等人,2006 年)). 编码 HrtAB 转运蛋白的基因失活会导致含有高浓度血红素的培养基中的生长受损(Stauff 等人,2008 年)。随后的分析确定了编码与hrtAB相邻的双组分调节系统的基因。由这些基因编码的蛋白质,称为 HssR 和 HssS,用于血红素传感器系统调节器和传感器,是对血红素毒性的适应性反应所必需的 ( Stauff et al., 2007 )。HssRS 感知血红素暴露,增加hrtAB的表达,从而减轻血红素毒性。HssS 检测到的确切分子仍有待阐明。金黄色葡萄球菌血红素毒性的发生部分是由于膜相关的氧化损伤,电子载体甲基萘醌增强了这种损伤(Wakeman 等人,2012 年)。尽管金黄色葡萄球菌HrtAB输出的减轻血红素毒性的分子尚不清楚,但乳酸乳球菌HrtAB 转运体特异性地外排血红素(Lechardeur 等人,2012 年)。HrtAB 系统的直系同源物已在炭疽杆菌、单核细胞增多性李斯特菌、粪肠球菌和无乳链球菌中鉴定出来(Anzaldi 和 Skaar,2010 年)。
)。放射性标记研究表明,Mtb 在通过内吞途径循环时从转铁蛋白或从细胞质铁储存中获取铁(Olakanmi 等人,200白摄取系统来获取宿主铁,尽管血红素摄取的确切机制尚未阐明(Tullius 等人,2011 年)。
为了抵消 Mtb 铁的获取,IFN-γ 激活巨噬细胞以下调细胞表面转铁蛋白受体,从而有效降低晚期内体中的铁浓度(Olakanmi 等人,2002 年)。此外,铁转运蛋白迅速定位于 Mtb 感染的吞噬溶酶体,导致铁从该细胞区室流出。分枝杆菌通过直接调节铁转运蛋白表达来规避这些铁抑制防御(Van Zandt 等人,2008 年)。
三、病原真菌对铁的获取和储存
致病真菌与细菌病原体一样,必须从宿主组织中获取铁并调节铁稳态以避免毒性。此外,在从共生生活方式转变为侵入性病原体生活方式的过程中,铁是某些真菌的重要信号(Chen 等人,2011 年)。一般来说,真菌中铁的获取存在三种机制:还原摄取、铁载体介导的摄取和血红素获取 ( Howard, 1999 )。与细菌一样,这些机制不一定相互排斥。
一种主要的真菌铁获取策略是还原性铁吸收。酿酒酵母和机会性真菌病原体如白色念珠菌和新型隐球菌具有与铁转运蛋白偶联的细胞表面铁还原酶。将三价铁还原为二价铁能够从宿主螯合分子中去除,并有助于运输到真菌细胞中。白色念珠菌和新型念珠菌都需要还原性铁摄取才能在动物感染模型中发挥完全毒力 ( Nevitt, 2011 )。白色念珠菌还能够使用还原摄取将宿主铁蛋白用作铁源。除了在菌丝形成、粘附和宿主细胞入侵中发挥作用外,念珠菌蛋白 Als3 还充当铁蛋白受体,表明铁获取成分可能在毒力中发挥多种作用(Almeida 等人,2008 年)。
与细菌病原体类似,多种病原真菌产生铁载体,包括地方性真菌病(荚膜组织胞浆菌和皮炎芽生菌)、接合菌生物体(根霉属)和其他侵入性霉菌(曲霉属)的病原体(霍华德,1999 年)。然而,与细菌病原体不同,真菌也可以产生细胞内铁载体,用于分配和储存铁。烟曲霉是免疫功能低下患者发生侵袭性疾病的重要原因,它产生两种细胞内铁载体:菌丝铁球蛋白和分生孢子羟基铁球蛋白(Schrettl 和 Haas,2011 年)). 通过维持适当的细胞内铁分布,这些化合物促进发芽和抗氧化应激,并且是侵袭性感染小鼠模型中完全毒力所必需的(Schrettl 等人,2007 年)。
真菌铁获取的第三种机制是血红素的摄取。添加血红素或血红蛋白后,新生隐球菌、白色念珠菌和荚膜梭菌在缺铁培养基中的生长得到增强( Foster,2002 年;Hu 等人,2013 年;Weissman 等人,2002 年)。与细菌血红素摄取系统不同,白色念珠菌对血红蛋白的摄取似乎利用了一种新的内吞介导机制(Weissman 等人,2008 年)。血红素摄取系统对真菌发病机制的重要性仍有待检验。
四、人类寄生虫中的铁稳态
寄生虫感染是全世界发病率和死亡率的重要来源。在某些情况下,体内寄生虫感染与人体铁稳态之间的联系非常直接。人类钩虫感染全世界超过 7 亿人,是发展中国家缺铁性贫血的主要原因(Long 等人,2003 年)。钩虫以人体血液为食,使用溶血素裂解红细胞和抗凝血剂以抵抗凝血。摄入的血红蛋白随后被一系列蛋白酶消化,然后用作营养源(Williamson 等人,2004 年)。在其他寄生虫感染中,病原体与宿主铁稳态之间的联系不那么直接,但许多人类寄生虫依赖宿主铁和含铁化合物引起疾病。
每年有多达三分之二的世界人口暴露于疟疾,其中超过 2.4 亿人将感染该疾病,多达 200 万人将死亡(Long 等人,2003 年)。疟疾是由五种疟原虫中的一种引起的,其中恶性疟原虫的毒性最强。疟原虫生命周期包括红细胞内阶段,创造了一个独特的机会来操纵宿主中最丰富的铁库。与人类钩虫类似,恶性疟原虫也使用宿主血红蛋白作为营养来源,并进化出一种独特的机制来防止铁中毒。血红蛋白被红细胞内的疟原虫摄取,运输到称为食物液泡的专门细胞器,并通过蛋白水解级联降解为营养氨基酸。然而,血红蛋白的消化也会释放血红素,血红素在浓度升高时是有毒的。为了限制毒性,疟原虫将血红素隔离成一种称为疟原虫色素的色素,这种色素会积聚在受感染个体的器官中。红细胞破裂后,疟原虫色素被释放到循环中并被吞噬细胞摄取,在其中具有深远的免疫调节作用(Hanscheid 等人,2007 年;Shio 等人,2010 年)。疟原虫色素介导的血红素解毒作用在恶性疟原虫中的重要性可通过喹啉类药物的临床疗效来说明,该药物可抑制疟原虫色素的合成。
疟疾的发病机制也说明了宿主铁代谢与先天免疫系统之间错综复杂的关系。铁和含铁化合物的解毒通过限制与铁过载相关的组织损伤在感染期间发挥细胞保护作用。例如,宿主组织中铁蛋白 H 链 (FtH) 表达的诱导通过 FtH 介导的铁螯合、铁氧化酶活性和通过调节 JNK 信号传导抑制氧化损伤来赋予对疟疾的耐受性(Gozzelino 等人,2012 年)). 然而,诱导细胞保护性铁解毒策略可能会限制先天免疫。非伤寒沙门氏菌 (NTS) 菌血症是一种常见且通常致命的疟疾并发症。疟疾期间的溶血会诱导 HO-1 的表达,HO-1 通过解毒血红素来保护宿主细胞。因此,HO-1 诱导限制了实验性疟疾的发病率(Seixas 等,2009)。然而,实验性疟疾期间 HO-1 的诱导会通过限制粒细胞的氧化爆发来削弱对 NTS 的抵抗力。(坎宁顿等人,2012). 因此,一种病原体诱导宿主铁解毒系统可能会改变对另一种病原体的易感性。然而,其他宿主铁螯合反应可能会增强先天免疫力。铁载体螯合分子 Lcn2 在疟疾期间大量产生。Lcn2 通过抑制网织红细胞增多、增强巨噬细胞功能和调节适应性免疫反应在控制寄生虫血症中发挥关键作用(Zhao 等人,2012 年)。
五、靶向微生物铁稳态治疗传染病
绝大多数人类病原体都需要铁来维持生长和在人类中定殖。因此,靶向微生物铁的获取是一种很有前途的治疗策略。目前正在开发针对病原体铁稳态的抗菌化合物和疫苗。
靶向病原体铁稳态的抗菌化合物可大致分为两类:靶向铁获取决定簇生物合成的化合物和利用铁获取途径选择性靶向抗生素的“特洛伊木马”化合物。在前一类中,以铁载体生产为目标的化合物具有最好的特征。最早用于治疗结核病的抗菌剂之一,对氨基水杨酸 (PAS),可抑制分枝杆菌素的生物合成(Ratledge 和 Brown,1972 年)). 随后,大量的铁载体生物合成抑制剂被开发出来。开发新抗菌剂的第二个与铁相关的策略是将铁载体与抗生素化合物共价连接以产生“铁霉素”。铁载体结合降低了几种抗生素的最低抑制浓度,包括 β-内酰胺类、万古霉素和氟喹诺酮类。选定的铁霉素的功效已在体内进行了评估。Albomycin 是一种由Streptomyces spp. 产生的铁霉素,可保护小鼠免受肺炎链球菌和小肠结肠炎耶尔森氏菌的全身感染(Pramanik 等人,2007 年)。同样,合成的铁载体结合的 β-内酰胺 MC-1 对体外和体内铜绿假单胞菌( McPherson et al., 2012 )。
已经研制出数量有限的专门针对病原体铁采集系统的疫苗。一种“反向疫苗学”方法表明,靶向 IsdA 和 IsdB 的抗体可防止金黄色葡萄球菌感染(Stranger-Jones 等人,2006 年)。同样,Alteri等人。使用大规模疫苗学方法来鉴定候选尿路致病性大肠杆菌疫苗抗原,并发现用六种外膜铁受体进行免疫可以预防 UTI(Alteri 等人,2009 年)。除了靶向铁获取蛋白外,靶向病原体中铁稳态的疫苗也取得了一些功效。来自人钩虫的Na -APR – 1 蛋白酶,Necator americanus对支持血液喂养的酶活性至关重要。用突变形式的Na -APR-1 接种疫苗可显着降低实验感染犬的寄生虫负担(Pearson 等人,2009 年)。
结束语
总之,人类病原体已经进化出多种机制来获取宿主铁。为了应对感染,先天免疫系统进一步加强了铁扣留防御,确保宿主-病原体界面仍然是贵金属不断发展的战场。尽管为确定感染期间铁稳态的宿主和微生物决定因素做出了相当大的努力,但仍有几个重要问题有待回答。首先,鉴于微生物通常拥有多余的铁获取机制,哪些微生物铁获取成分对发病机制最关键?此外,哪些铁获取决定因素在用于疫苗构建时最能引发保护性免疫?最近终止了金黄色葡萄球菌的人体临床试验含有 IsdB 的疫苗强调,感染动物模型中的保护性免疫可能并不总是与人类疫苗效力相关(Daum 和 Spellberg,2012 年)。关于感染和炎症期间的人体铁稳态,是否有可能设计出操纵铁调素轴以赋予对传染病的耐受性的疗法?这种方法可能有利于治疗因补铁而加剧的传染病。最后,假定的哺乳动物铁载体的发现表明人类可能使用类似于微生物的机制来维持铁稳态(Bao 等人,2010 年;Devireddy 等人,2010 年)). 哺乳动物铁载体是否在营养免疫方面具有特定功能仍有待检验,但这些化合物表明,加强对微生物铁获取策略的理解可以进一步加深我们对人类生理学的理解。
供稿:加拿大通用营养集团
Contributed by General Nutrition Group